麦角菌(ばっかくきん)は、ムギ類を含むイネ科植物に感染する菌類です。この菌が作る「麦角アルカロイド」は、人間や家畜に強い生理作用を及ぼす毒性物質として知られています。
歴史的には、麦角菌に汚染されたライムギなどを食べることで、痙攣や壊疽などを引き起こす麦角中毒(麦角病)が発生してきました。ヨーロッパでは「聖アントニウスの火」 (St. Anthony’s fire) とも呼ばれてきました。現代でも発生すると小麦粉の品質を著しく低下させるため、深刻な経済的損害をもたらします。
さらに、1938年にスイスの化学者アルバート・ホフマン(Albert Hofmann)によって初めて合成され、日本では1970年に麻薬として規制されたLSD(リゼルグ酸ジエチルアミド)は麦角菌に含まれるリゼルグ酸を基に合成される強力な依存性が高い半合成幻覚剤です。依存症になるリスクが高く、現在の日本では絶対に使用してはいけません。
しかし、悪いことばかりではなく、麦角アルカロイドの一部は片頭痛治療薬・子宮収縮薬・止血薬・パーキンソン病や高プロラクチン血症の治療薬の原料としても利用されます。
LSDについても、LSDで見える歪んだ視覚世界や極彩色のビジョン、独特の音響を再現しようとした結果、「サイケデリック・ロック」 や、原色を多用したうねるようなデザインの「サイケデリック・アート」 が誕生し、1960年代後半にアメリカのサンフランシスコを中心にヒッピー文化(カウンターカルチャー)とも結びつきました。
LSDはデフォルト・モード・ネットワーク(DMN)を抑制し、独創性・創造性を促すために使用されることもありました。アップル創業者のスティーブ・ジョブズが「LSDの摂取は人生で最も重要な体験の一つだった」と公言したことは有名です。
近年では「サイケデリック・ルネサンス」と呼ばれる再評価で、適正な量でうつ病や不安障害を治療する「サイケデリック療法」も注目されています(Yehuda & Lehrner, 2023)。
このように麦角菌は人間社会に極めて両極端な功罪を生み出しています。
ところで、ここで一つの疑問が生じます。
そもそも、なぜ麦角菌はこのような強い生理活性を持つ物質を作るのでしょうか?
人間にとって有害な物質を作ることが、麦角菌にとってどのような意味を持つのでしょうか。
この疑問を考えるには、単にアルカロイドがどのように合成されるのかを調べるだけでは不十分です。重要なのは、麦角アルカロイドを作る能力が、麦角菌の生存や繁殖にどのような利益をもたらしてきたのかという進化的な視点です。
結論から言うと、自身が哺乳類や昆虫に捕食されることから身を守ることに加えて、寄生している植物自体を保護することが目的であると証明されています。ただし、細かい成分の違いが具体的にどのような生物に対して影響を持っているかまでは分かっていません。
麦角菌が分泌する甘露もハエやガなどの昆虫を誘引し、昆虫の体に付着した分生子が別の花へ運ばれることで、感染拡大にも役立っていることも分かっています。
本記事では、まず麦角菌の生物学的特徴と麦角アルカロイドの性質を整理します。そのうえで、至近因と究極因を区別し、特に究極因、つまり進化生物学的な理由について、科学論文をもとに考察します。
麦角菌とはどのような生物なのか?
麦角菌とは、子嚢菌門(Ascomycota)のバッカクキン科(Clavicipitaceae)に属する菌類のうち、主にClaviceps属の菌の総称です。
代表的な種として、ライ麦やさまざまなイネ科植物に感染するバッカクキン Claviceps purpurea が知られています。
麦角菌の大きな特徴は、植物の葉や茎ではなく、主に花の子房に感染することです。
一般的な植物病原菌とは異なる、非常に特徴的な生活環を持っています。
麦角菌の生活環
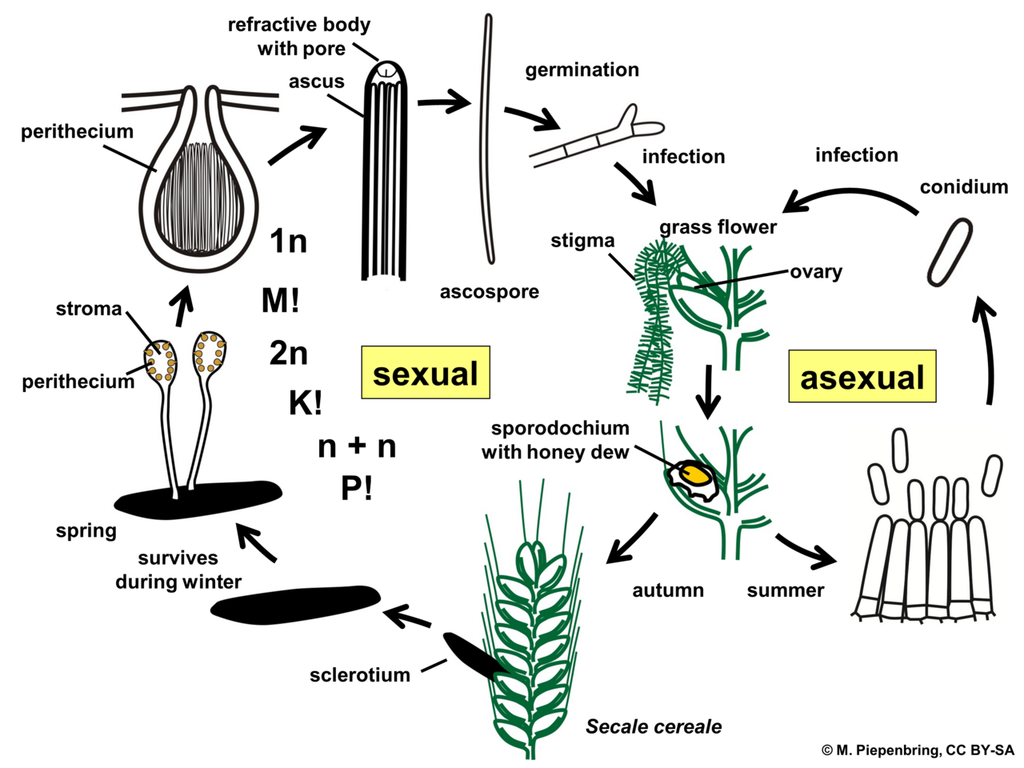
麦角菌の生活環は、おおむね次のように進行します。
- 菌核(sclerotium)による越冬
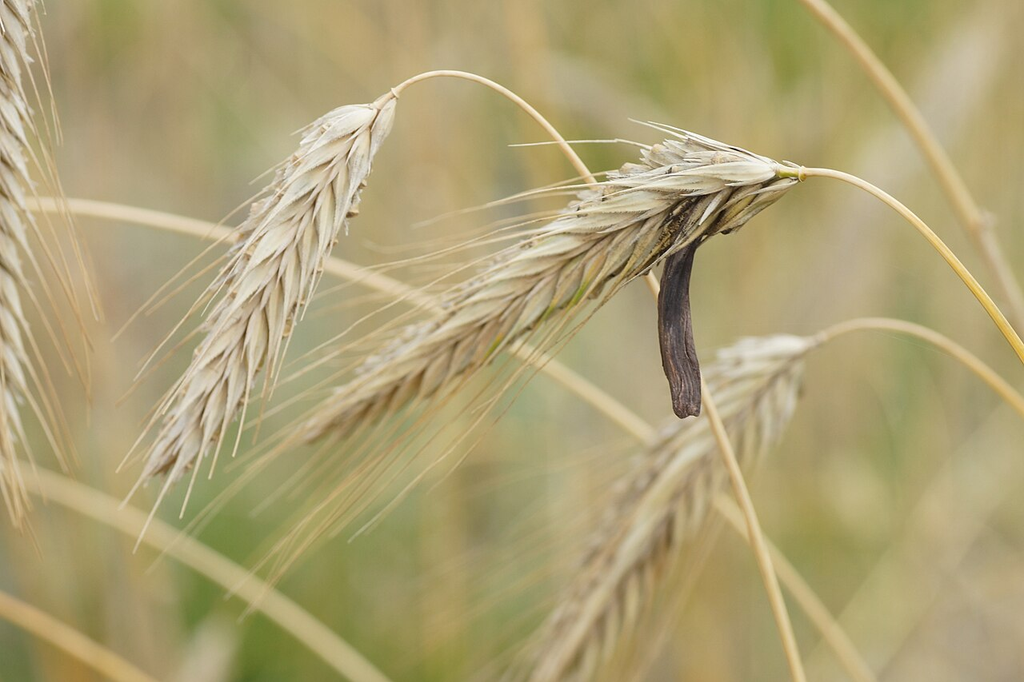
麦角菌は、植物の種子の代わりに形成した菌核という硬い構造で休眠・越冬します。菌核は黒紫色から黒褐色で、麦の穂から突き出た角のような形をしています。 - 子実体の形成と子嚢胞子の放出
春になると菌核が発芽し、子実体(ストロマ)を形成します。その内部の子嚢で子嚢胞子が作られ、周囲に放出されます。 - イネ科植物の花への感染
子嚢胞子は開花中のイネ科植物の花に到達します。柱頭などから侵入し、子房の内部に菌糸を伸ばして感染を成立させます。 - 甘露(honeydew)の形成
感染した子房では菌糸が増殖し、甘露と呼ばれる糖分を含む液体が分泌されます。この液体には無性胞子(分生子)が含まれ、昆虫や雨滴などによって別の花へ運ばれます。 - 菌核の形成
感染が進むと、子房は最終的にバナナ形の菌核へと置き換わります。菌核は次の季節まで生存し、新たな感染サイクルを開始するための重要な構造です。
このように、麦角菌は植物の花に感染し、甘露による無性生殖と菌核による休眠・越冬を組み合わせて生活しています(Tudzynski & Scheffer, 2004)。
特に重要なのは、麦角アルカロイドが菌核に蓄積することです。
菌核は単なる感染の結果として生じる組織ではありません。次の感染機会まで菌を生存させるための重要な構造です。
麦角アルカロイドとは何か?
麦角アルカロイド(ergot alkaloids)は、主にバッカクキン科の菌類などによって生産される、インドール骨格を持つ二次代謝産物のグループです。
二次代謝産物とは、細胞の基本的な生命活動に直接必要な代謝産物とは異なり、生物間相互作用や環境への適応などに関係すると考えられる化合物です。
麦角アルカロイドは、動物の神経系に強い影響を及ぼすことが特徴です。
なお、ややこしいですが、麦角アルカロイドを生産するのは麦角菌(Claviceps属)だけではなく、エピクロエ属やアスペルギルス・フミガーツス Neosartorya fumigata などいくつか別のグループも存在します。
麦角アルカロイドの主な種類
麦角アルカロイドは、化学構造によって大きく3つのグループに分類できます。
- クラビン類(Clavines):比較的単純な構造を持つ麦角アルカロイド。
- リゼルグ酸誘導体:リゼルグ酸を基本とする化合物群。
- エルゴペプチン類(Ergopeptines):リゼルグ酸誘導体にペプチド部分が結合した複雑な化合物群。
代表的な化合物には、エルゴタミン(ergotamine)・エルゴメトリン(ergometrine)・エルゴクリスチン(ergocristine)などがあります。
これらは化学構造だけでなく、生理作用にも違いがあります(Florea et al., 2017)。エルゴタミンは片頭痛薬、エルゴメトリンは子宮収縮止血剤に使用されます。
なぜ動物に毒性を示すのか?
麦角アルカロイドの重要な特徴は、セロトニン・ドーパミン・アドレナリンなどのモノアミン系神経伝達物質の受容体に作用することです。
これらの受容体に対して、作動薬または拮抗薬として働くことで、神経系や血管系などにさまざまな影響を与えます。
その結果、化合物の種類や摂取量によって、以下のような作用が生じます。
- 血管収縮
- 平滑筋の収縮
- 神経系への作用
- 摂食行動への影響
- 運動機能への影響
麦角アルカロイドの毒性は、麦角菌にとっては本来は人間や家畜を苦しめるためのものではありません。むしろ、野生動物の生理機能に作用する性質が、自然界で何らかの生態的利益につながっている可能性があります。
麦角アルカロイドが作られる仕組み:至近因
ここからは、麦角アルカロイドがなぜ作られるのかを考える前に、どのように作られるのかを整理します。
これは進化生物学でいう「至近因」に相当します。
麦角アルカロイドの生合成経路
麦角アルカロイドの生合成は、トリプトファンというアミノ酸を出発物質として始まります。
最初の重要な反応は、トリプトファンにジメチルアリル基を付加する反応です。この反応を触媒するのが、DMAT合成酵素(dimethylallyltryptophan synthase)です。
その後、複数の酵素反応を経て、麦角アルカロイドに特徴的なエルゴリン骨格が形成されます。
さらに、菌の種類や保有する酵素の違いによって、さまざまな麦角アルカロイドへと変換されます。
生合成遺伝子クラスター
麦角アルカロイドの合成には、複数の遺伝子が関与しています。
これらはEAS(ergot alkaloid synthesis)遺伝子クラスターと呼ばれる、互いに関連した遺伝子群を形成しています。
代表的な遺伝子には以下のものがあります。
- dmaW:トリプトファンへのジメチルアリル基の付加に関与。
- easA:初期中間体の変換に関与。
- easD:クラビン類の形成に関与。
- cloA:リゼルグ酸への変換に関与。
- lpsA、lpsB:エルゴペプチン類の形成に関与。
これらの遺伝子の有無や機能の違いによって、最終的に作られるアルカロイドの種類が変わります。
つまり、麦角菌の種類によってアルカロイドの組成が異なるのは、生合成遺伝子クラスターの構成や酵素の機能が異なるためです(Florea et al., 2017; Young et al., 2015)。
ここまでが、麦角アルカロイドが作られる仕組み、すなわち至近因です。
しかし、これだけでは本題の答えにはなりません。
なぜ麦角菌は、進化の過程でこのような生合成能力を獲得し、維持してきたのでしょうか?
次に、究極因について考えていきます。
なぜ麦角菌は麦角アルカロイドを作るのか?究極因から考える
究極因とは、生物が持つ形質が進化の過程でどのような適応的利益をもたらし、自然選択によって維持されてきたのかを説明するものです。
例えば、鳥が翼を持つ至近因は、翼を形成する遺伝子や発生過程によって説明できます。一方、究極因は、飛翔能力が生存や繁殖にどのような利益をもたらしたのかという観点から説明します。
同じように、麦角菌が麦角アルカロイドを作る仕組みは生化学的に説明できますが、それが進化的に維持されてきた理由は、生態学的な観点から考える必要があります。
現在、特に重要だと考えられるのは次の仮説です。
- 動物による食害を防ぐための化学的防御
- 宿主植物を保護することによる間接的な利益
- 生合成遺伝子の獲得と多様化による生態的適応
それぞれの仮説について、科学的な証拠を見ていきましょう。
動物による食害から身を守るため
最も有力な説明の一つが、麦角アルカロイドは動物に対する化学的防御として機能しているというものです。
自然界では、植物や菌類は昆虫、草食動物、菌食性動物など、さまざまな生物から食害を受けます。
こうした捕食・食害に対抗する方法の一つが、毒性や忌避性を持つ化学物質を生産することです。
例えば、植物がアルカロイドやテルペノイドを作るのは、昆虫や草食動物による食害を減らすための防御機構として説明されることがあります。
麦角菌も同様に、麦角アルカロイドによって動物の摂食を抑制している可能性があります。
麦角アルカロイドは哺乳類の摂食を抑制する
麦角アルカロイドが動物に対する防御として働くことを示す研究があります。
Wäli et al.(2013)は、麦角菌に感染した植物と草食動物との関係を調べました。
この研究では、ヒツジを用いた選択実験において、麦角菌に感染した植物を含む飼料が避けられることが示されました。
つまり、麦角菌の感染によって植物にアルカロイドが蓄積すると、草食動物がその植物を食べにくくなる可能性があります。
また、ヒツジが放牧されている牧草地では、放牧されていない周辺地域と比較して、麦角菌に感染した花序の割合が高いことも報告されています。
この結果は、麦角菌の感染が草食動物による食害を受けにくくする可能性と整合的です。
麦角アルカロイドは昆虫の摂食を抑制する
Clay and Cheplick(1989)は、イネ科植物に感染する内生菌が作る麦角アルカロイドについて、昆虫への影響を調べています。
この研究では、麦角アルカロイドを用いて、ツマジロクサヨトウ Spodoptera frugiperda の幼虫の生存率や摂食量、成長などへの影響が調べられました。
このような研究は、麦角アルカロイドが昆虫の食害を抑制する化学的防御として機能する可能性を支持しています。
さらに、Laihonen et al. (2022)は、オオウシノケグサ Festuca rubra に発生する Claviceps purpurea とアブラムシの発生率の相関関係を調べた所、Claviceps purpurea に感染していない植物には、感染している植物の約4.5倍のアブラムシが観察されることを示しました。また、Claviceps 感染株の59%ではアブラムシが全く見られませんでした。
この研究では、エピクロエ属 Epichloë という菌が麦角菌の感染を促していることも示されています。
麦角アルカロイドが昆虫の生体防御・免疫応答を抑制する可能性
Panaccione and Arnold(2017)は、麦角アルカロイドが蛾の一種であるハチノスツヅリガにおける菌の病原性に関与することを示しています。
この研究では、アスペルギルス・フミガーツス Aspergillus fumigatus の麦角アルカロイド生合成に関係する遺伝子を欠損させた変異株を用いて、昆虫モデルであるハチノスツヅリガ Galleria mellonella への感染実験を行いました。
その結果、麦角アルカロイドの生産能力を失った変異株では、野生株と比較して病原性が低下しました。
こちらは、Claviceps purpurea のように直接攻撃・撃退する毒素というよりは、生きた菌が感染・増殖する過程(例えば宿主の生体防御・免疫応答からの保護など)で寄与している可能性が示唆されています。
宿主植物を守ることで、麦角菌自身にも利益がある
麦角アルカロイドの進化を考えるうえで、非常に興味深いのが、麦角菌と宿主植物との関係です。
一般に、Claviceps purpurea は植物の種子を菌核に置き換えてしまうため、植物病原菌として分類されます。
しかし、植物と菌類の関係は、必ずしも単純な「病原菌と宿主」という関係だけではありません。
菌が植物に感染することで、植物側にも何らかの利益が生じる場合があります。
例えば、植物に共生する内生菌がアルカロイドを生産し、草食動物による食害から宿主植物を守る現象が知られています。
このような関係は「防御的相利共生(defensive mutualism)」と呼ばれます。
宿主植物を守ることが菌自身の利益になる理由
一見すると、菌が宿主植物を守ることは、菌自身にとって不利益のように思えるかもしれません。
しかし、宿主植物と密接に関係しながら生活する菌にとって、宿主が生存し続けることは、自身の生存や繁殖にとっても重要です。
例えば、宿主植物が草食動物に食べられてしまえば、菌が利用できる生息場所や栄養資源も失われる可能性があります。
一方、アルカロイドによって宿主植物が食べられにくくなれば、菌にとっても生活環境が維持されることになります。
つまり、
- 菌がアルカロイドを作る。
- 宿主植物が草食動物から守られる。
- 宿主植物が生存し続ける。
- 菌も宿主とともに生存・繁殖する機会を得る。
という関係が成立する可能性があります。
これは、菌と植物の双方に利益が生じる仕組みです。
麦角菌でも同様の現象が起こるのか?
この疑問について、Wäli et al.(2013)は、Claviceps purpurea とイネ科植物の関係を調べています。
先ほど紹介した研究では、麦角菌に感染した植物はヒツジに食べられにくくなることが示されました。
さらに、野生のオオウシノケグサ Festuca rubra を調べたところ、感染による種子の減少は統計的に有意ではありませんでした。ただし、菌核の数が増えるほど、正常な種子の形成が減少する傾向が確認されました。
この結果から、研究者たちは、麦角菌が基本的には植物病原菌である一方、状況によっては宿主植物を草食動物から守るという間接的な利益をもたらす可能性を指摘しています。
そして、このような関係を「条件付き防御的相利共生(conditional defensive mutualism)」と表現しました。
菌にとってアルカロイド生産が有利であり、その結果として宿主植物にも利益が生じるならば、双方にとって有利な関係が成立する可能性があります。
ただし、Claviceps purpurea は植物の種子を失わせる病原菌でもあります。
したがって、感染による種子の損失と、草食動物から守られる利益のどちらが大きいかによって、植物にとっての感染の影響は変わります。
この研究は、病原菌と宿主植物の関係が、必ずしも一方的な搾取だけでは説明できないことを示す興味深い事例です。
麦角アルカロイドの多様化は、さまざまな生態環境への適応を反映している
バッカクキン科の菌類が作るアルカロイドは、すべて同じではありません。
菌の種類によって、生産されるアルカロイドの種類や量が異なります。
例えば、ある菌はクラビン類を主に生産し、別の菌はリゼルグ酸誘導体やエルゴペプチン類を生産します。
このような化学的多様性は、進化生物学的にも興味深い現象です。
では、なぜ麦角アルカロイドはこれほど多様化したのでしょうか?
遺伝子の獲得・喪失・機能変化
Young et al.(2015)は、麦角アルカロイドの生合成遺伝子を比較し、その進化過程を詳しく調べています。
その研究では、麦角アルカロイドの多様化に関係する主な進化的プロセスとして、次の3つが挙げられています。
- 遺伝子の獲得
新たな生合成遺伝子を獲得することで、これまで作れなかった化合物を生産できるようになる可能性があります。 - 遺伝子の喪失
一部の遺伝子が失われることで、生合成経路が変化し、最終的に蓄積するアルカロイドの種類が変わる可能性があります。 - 遺伝子の機能変化(新機能化)
遺伝子の配列が変化することで、酵素の基質特異性や反応産物が変化し、新しい化合物を作る能力が生まれる可能性があります。
このような変化によって、菌の種類ごとに異なるアルカロイドの組成が生じてきたと考えられます。
さらに、遺伝子の発現量が変化することでも、特定の中間代謝産物が蓄積し、アルカロイドの組成が変わる可能性があります。
なぜアルカロイドの種類が多様化することに意味があるのか?
アルカロイドの種類が違えば、動物に対する作用も異なります。
例えば、ある化合物は昆虫に対して強い毒性を示し、別の化合物は哺乳類の神経系や血管系に強く作用するかもしれません。
したがって、さまざまなアルカロイドを生産できることは、異なる動物群や生態環境に対する化学的防御の幅を広げる可能性があります。
Panaccione(2005)は、麦角アルカロイドの多様性が、異なる生物に対する作用を通じて生産菌に利益をもたらす可能性を論じています。
ただし、個々のアルカロイドの多様化が、どの動物に対する適応によって生じたのかについては、まだ十分に解明されていません。
つまり、遺伝子の多様化と化合物の多様化は明らかになっていますが、そのすべてを特定の生態的選択圧に結び付けることはできないのです。
水平遺伝子伝播による生合成能力の獲得
さらに興味深いのが、麦角アルカロイドの生合成能力そのものが、菌類の進化の過程で水平遺伝子伝播によって獲得された可能性です。
水平遺伝子伝播(horizontal gene transfer)とは、親から子へ遺伝子が受け継がれる通常の遺伝とは異なり、生物間で遺伝子が移動する現象です。
Marcet-Houben and Gabaldón(2016)は、バッカクキン科の菌類が持つアルカロイド生合成遺伝子クラスターについて、系統解析を行いました。
その結果、麦角アルカロイドやロリンなどの生合成に関係する遺伝子群が、進化的に離れた菌類の間で水平遺伝子伝播によって移動した可能性を示しました。
これは、バッカクキン科の菌類がアルカロイドを作る能力を、すべて祖先から垂直に受け継いできたわけではない可能性を示すものです。
この研究では、植物と密接に関係する菌類が、植物を草食動物から守るための化学物質を生産する能力を獲得したという進化的シナリオも議論されています。
ただし、水平遺伝子伝播が確認されたからといって、アルカロイド生産能力の獲得時点での選択圧が必ずしも植物防御だったと確定するわけではありません。
遺伝子を獲得した当初の機能と、現在の生態系における機能が異なる可能性もあります。
この点は、二次代謝産物の進化を考えるうえで非常に重要です。
麦角菌がアルカロイドを作る究極因について、現在どこまで分かっているのか?
ここまでの研究をまとめると、麦角アルカロイドの進化的な意義について、いくつかの重要な点が見えてきます。
まず、麦角アルカロイドは動物の神経系に作用し、昆虫や哺乳類の摂食を抑制する可能性があります。
このことから、動物による食害を防ぐ化学的防御として進化してきたという仮説には、一定の実験的な裏付けがあります。
また、宿主植物を食害から守ることによって、菌自身も生息場所や栄養資源を維持できる可能性があります。
さらに、生合成遺伝子の獲得・喪失・機能変化によって、菌類の間でさまざまなアルカロイドが進化してきたことも分かっています。
ただし、これらの知見には証拠の強さに違いがあります。
- 動物の食害を防ぐ化学的防御:摂食忌避や昆虫への影響を示す実験があり、比較的強い証拠があります。
- 宿主植物を保護する間接的利益:ヒツジの選択実験や野外観察による支持がありますが、利益は環境条件に依存します。
- 遺伝子の多様化による生態的適応:遺伝的多様化は強く支持されていますが、それぞれの変化がどの選択圧によって生じたのかは一部未検証です。
ここで特に重要なのは、麦角アルカロイドを作る理由を一つに限定する必要はないということです。
ある環境では、昆虫による食害を抑えることが重要かもしれません。
別の環境では、哺乳類による摂食を防ぐことが有利になるかもしれません。
また、宿主植物との関係や菌の生活環によっても、アルカロイド生産の利益は変わる可能性があります。
自然選択は、必ずしも一つの目的だけに向かって働くわけではありません。
麦角アルカロイドの進化も、さまざまな生物との相互作用の中で形成されてきたと考えるのが妥当です。
麦角菌はなぜ甘露を分泌するのか?昆虫を利用した胞子散布の仕組み
麦角菌 Claviceps purpurea は、イネ科植物の花に感染すると、甘露(honeydew)と呼ばれる糖分を豊富に含む液体を分泌します。この甘露には無性生殖によって形成された分生子が大量に含まれています。
これはなぜなのでしょうか?
甘露自体は宿主植物の師部液に由来する糖を含み、菌の栄養獲得と密接に関係しています(Mower & Hancock, 1975; Tudzynski & Scheffer, 2004)。しかし、甘露はハエやガなどの昆虫を誘引し、昆虫の体に付着した分生子が別の花へ運ばれることで、感染拡大にも役立っていることも分かっています。
実際に、Butler et al.(2001)は野外で採集した昆虫を調査し、ガやハエなどから麦角菌の分生子を検出しました。この結果は、昆虫が麦角菌の胞子を運搬することを支持しています。蛾では最大100%、ハエでは75%、ヨコバイでは60%、アザミウマでは32%が胞子で汚染されていました。
日本のシマスズメノヒエを対象とした研究でもほとんど夜行性の蛾のみが甘露に集まることが分かっています(Sugiura & Yamazaki, 2007)。
この現象を進化生物学的に考えると、甘露には宿主植物から糖を獲得するという生理的な側面だけでなく、昆虫を介した胞子散布を促進するという生態的な側面もあると考えられます。昆虫による胞子散布が菌の感染機会を増やすのであれば、甘露を伴う胞子散布システムは、菌の繁殖成功率を高める可能性があります。
まとめ:麦角菌はなぜ毒を作るのか?
麦角菌が麦角アルカロイドを生産する理由を進化生物学的に考えると、最も有力なのは、動物による食害を抑制するための化学的防御として機能しているという説明です。
麦角アルカロイドは、昆虫や哺乳類の神経系に作用し、摂食行動や生存に影響を与えます。
この性質は、麦角菌自身や、菌が生活する宿主植物を食害から守るうえで有利に働く可能性があります。
特に興味深いのは、麦角菌が植物病原菌でありながら、状況によっては宿主植物にも防御的な利益を与える可能性があることです。
また、麦角アルカロイドの生合成遺伝子クラスターは、遺伝子の獲得・喪失・機能変化などを通じて進化してきました。その結果、菌類の系統ごとに異なるアルカロイドが生産されるようになったと考えられています。
ただし、すべてのアルカロイドが同じ生態的機能を持つとは限りません。また、麦角菌が現在生産しているアルカロイドのすべてについて、進化的な選択圧が明らかになっているわけでもありません。
今後は、特定のアルカロイドを生産できない変異株と野生株を比較し、昆虫や哺乳類による食害、菌核の生存率、菌の繁殖成功率などを調べることで、アルカロイド生産が麦角菌自身の適応度にどの程度貢献しているのかを明らかにする必要があります。
麦角菌にとって毒を作ることは、単に代謝産物を蓄積することではなく、他の生物との相互作用の中で生存と繁殖の機会を確保するための進化的な戦略なのかもしれません。
引用文献
Butler, M. D., Hammond, P. C., & Berry, R. E. (2001). Association of insects and ergot (Claviceps purpurea) in Kentucky bluegrass seed production fields. Journal of Economic Entomology, 94(6), 1471-1476. https://doi.org/10.1603/0022-0493-94.6.1471
Clay, K., & Cheplick, G. P. (1989). Effect of ergot alkaloids from fungal endophyte-infected grasses on fall armyworm (Spodoptera frugiperda). Journal of Chemical Ecology, 15(1), 169-182. https://doi.org/10.1007/BF02027781
Florea, S., Panaccione, D. G., & Schardl, C. L. (2017). Ergot alkaloids of the family Clavicipitaceae. Phytopathology, 107(5), 504-518. https://doi.org/10.1094/PHYTO-12-16-0435-RVW
Laihonen, M., Saikkonen, K., Helander, M., Vázquez de Aldana, B. R., Zabalgogeazcoa, I., & Fuchs, B. (2022). Epichloë endophyte-promoted seed pathogen increases host grass resistance against insect herbivory. Frontiers in Microbiology, 12, 786619. https://doi.org/10.3389/fmicb.2021.786619
Marcet-Houben, M., & Gabaldón, T. (2016). Horizontal acquisition of toxic alkaloid synthesis in a clade of plant associated fungi. Fungal Genetics and Biology, 86, 71-80. https://doi.org/10.1016/j.fgb.2015.12.006
Miedaner, T., & Geiger, H. H. (2015). Biology, genetics, and management of ergot (Claviceps spp.) in rye, sorghum, and pearl millet. Toxins, 7(3), 659-678. https://doi.org/10.3390/toxins7030659
Mower, R. L., & Hancock, J. G. (1975). Mechanism of honeydew formation by Claviceps species. Canadian Journal of Botany, 53(23), 2826-2834. https://doi.org/10.1139/b75-310
Panaccione, D. G. (2005). Origins and significance of ergot alkaloid diversity in fungi. FEMS Microbiology Letters, 251(1), 9-17. https://doi.org/10.1016/j.femsle.2005.07.039
Panaccione, D. G., & Arnold, S. L. (2017). Ergot alkaloids contribute to virulence in an insect model of invasive aspergillosis. Scientific Reports, 7, Article 8930. https://doi.org/10.1038/s41598-017-09107-2
Sugiura, S., & Yamazaki, K. (2007). Migratory moths as dispersal vectors of an introduced plant-pathogenic fungus in Japan. Biological Invasions, 9(2), 101-106. https://doi.org/10.1007/s10530-006-9006-8
Tudzynski, P., & Scheffer, J. (2004). Claviceps purpurea: Molecular aspects of a unique pathogenic lifestyle. Molecular Plant Pathology, 5(5), 377-388. https://doi.org/10.1111/j.1364-3703.2004.00237.x
Wäli, P. P., Wäli, P. R., Saikkonen, K., & Tuomi, J. (2013). Is the pathogenic ergot fungus a conditional defensive mutualist for its host grass? PLOS ONE, 8(7), e69249. https://doi.org/10.1371/journal.pone.0069249
Yehuda, R., & Lehrner, A. (2023). Psychedelic therapy—a new paradigm of care for mental health. JAMa, 330(9), 813-814. https://doi.org/10.1001/jama.2023.12900
Young, C. A., Schardl, C. L., Panaccione, D. G., Florea, S., Takach, J. E., Charlton, N. D., Moore, N., Webb, J. S., & Jaromczyk, J. (2015). Genetics, genomics and evolution of ergot alkaloid diversity. Toxins, 7(4), 1273-1302. https://doi.org/10.3390/toxins7041273