人間の耳の奥には、身体のバランスを保つために重要な役割を果たしている「三半規管」という器官があります。
三半規管は、互いに異なる方向に配置された3つの半円状の管から構成されており、頭部の回転運動を感知しています。私たちが歩いたり、走ったり、頭を動かしたりしても姿勢を維持できるのは、この器官が重要な役割を果たしているためです。
しかし、三半規管は最初から現在のような形をしていたわけではありません。
その進化の歴史をたどると、魚類などの水生動物が持つ「側線器官」や、脊椎動物の祖先が持っていた原始的な機械受容システムに行き着きます。
さらに、脊椎動物の進化を古生物学的・発生学的に調べると、現在の三半規管がどのような過程で形成されたのかについても、興味深い事実が明らかになっています。
例えば、脊椎動物亜門に属するヌタウナギとヤツメウナギでは、顎を持つ脊椎動物とは異なる内耳の構造が見られます。また、古生代の化石脊椎動物からも、初期の半規管の構造を推定する手がかりが得られています。
特に重要なのが、顎を持つ脊椎動物に特徴的な3つ目の半規管、すなわち外側半規管の進化です。
では、三半規管はどのような器官から進化し、なぜ3つの半規管を持つ構造になったのでしょうか?
この記事では、三半規管の進化を至近因と究極因に分けて考えながら、側線器官との進化的関係、化石に残された証拠、ヌタウナギやヤツメウナギの発生過程、そして水中生活から陸上生活への移行について解説します。
三半規管の進化を理解するための「至近因」と「究極因」
三半規管がなぜ進化したのかを考える際には、進化生物学における「至近因」と「究極因」という2つの考え方を区別する必要があります。
この2つは、生物の特徴がなぜ存在するのかを異なる視点から説明するものです。
至近因:三半規管はどのように働くのか?
至近因とは、生物の特徴がどのような仕組みで発現し、どのように機能しているのかを説明するものです。
三半規管の場合、頭部の回転運動をどのような仕組みで感知しているのか、という問題になります。
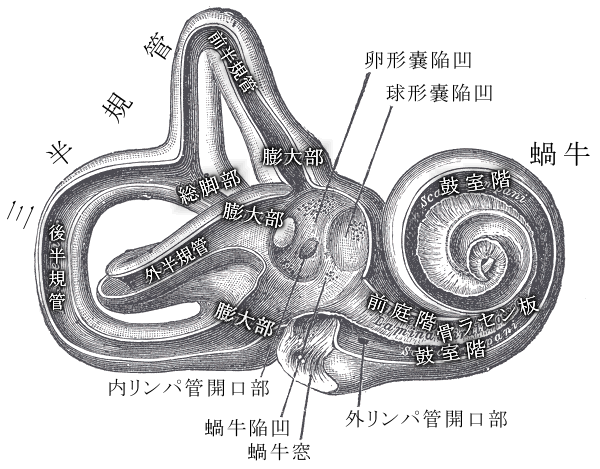
三半規管の内部は、内リンパ液という液体で満たされています。また、それぞれの半規管の膨大部には、感覚毛を持つ有毛細胞が存在しています。
頭部が回転すると、慣性によって内リンパ液の動きが頭部の回転に遅れます。その結果、半規管内に存在するクプラというゼリー状の構造が変形し、有毛細胞の感覚毛が曲げられます。
この機械的な刺激が電気信号へと変換され、前庭神経を通じて脳に伝えられます。
脳はこの情報を視覚や筋肉・関節から得られる固有感覚などと統合することで、頭部の回転方向や身体の動きを把握します。
つまり、三半規管は主に頭部の角加速度を検出する器官なのです。
一方、内耳には三半規管だけでなく、卵形嚢と球形嚢という耳石器官も存在しています。これらは重力や直線加速度を感知する役割を担っています。
三半規管と耳石器官が協力することで、動物は自分の身体の運動や重力に対する向きを把握できるのです(Mackowetzky et al., 2021)。
究極因:なぜ三半規管は進化したのか?
究極因とは、生物の特徴が進化の過程でどのような適応上の利点をもたらしたのかを説明するものです。
三半規管の場合、なぜ身体の回転運動を感知する仕組みが進化したのか、という問題になります。
動物が生きていくためには、自分の身体がどの方向を向き、どのように動いているのかを把握する必要があります。
例えば、次のような状況を考えてみましょう。
- 捕食者から逃げるために急旋回する。
- 獲物を追いかけるために方向を変える。
- 移動中に身体の姿勢を調整する。
- 頭部の動きに合わせて視線を安定させる。
このような運動を適切に制御するためには、身体の回転運動を正確に把握することが重要です。
回転運動を感知できる能力は、移動の効率や捕食・逃避行動、姿勢制御などに有利に働いたと考えられます。
ただし、三半規管が進化した理由を一つの機能だけで説明することはできません。祖先の感覚器官が持っていた機能や、運動様式の変化など、複数の要因が関係していたと考える必要があります。
三半規管の進化の起源:側線器官との関係
三半規管の進化を考えるうえで重要なのが、魚類などの水生動物が持つ「側線器官」です。
側線器官は、水中の流れや振動を感知するための感覚器官です。
三半規管と側線器官には、機械的な刺激を感知する有毛細胞という共通点があります。
この共通性は、脊椎動物の感覚器官がどのように進化してきたのかを考える重要な手がかりになります。
側線器官とは何か?
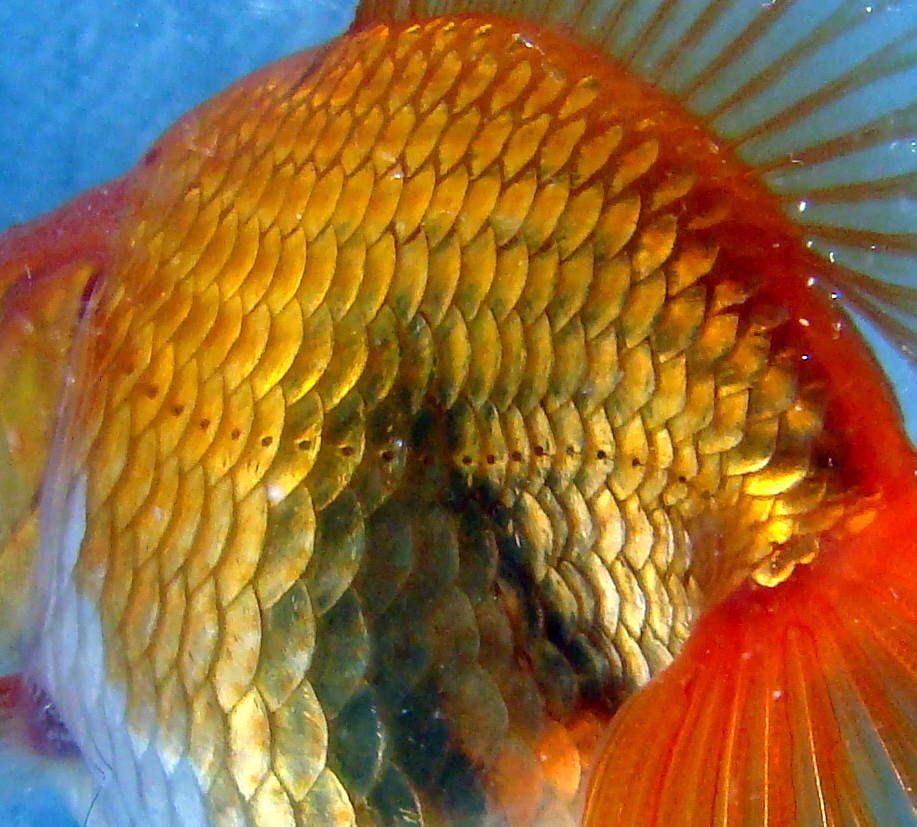
側線器官は、魚類の頭部から体側にかけて存在する感覚器官です。
側線器官には「神経丘(ニューロマスト)」と呼ばれる感覚構造が存在しています。
神経丘には有毛細胞が並んでおり、その先端には感覚毛が伸びています。感覚毛はクプラと呼ばれるゼリー状の構造に覆われています。
周囲の水が動くとクプラが変形し、それによって有毛細胞の感覚毛が刺激されます。
この刺激が神経信号へと変換され、脳に伝えられるのです。
側線器官によって感知できる情報には、次のようなものがあります。
- 周囲の水流の方向や強さ
- 水中を移動する物体によって生じる水の振動
- 障害物の存在によって生じる水流の変化
- 他の個体の動きによって生じる水の動き
例えば、魚が暗い水中で泳いでいる場合でも、周囲の水の動きを感知することで、近くにいる他の魚や障害物の存在を把握できます。
また、獲物が近くを泳いだときに生じる水の振動を感知し、捕食行動に利用することもできます。
つまり、側線器官は水という媒体を通して、周囲の環境を把握するための感覚器官なのです(Baker et al., 2008; Venkataraman et al., 2025)。
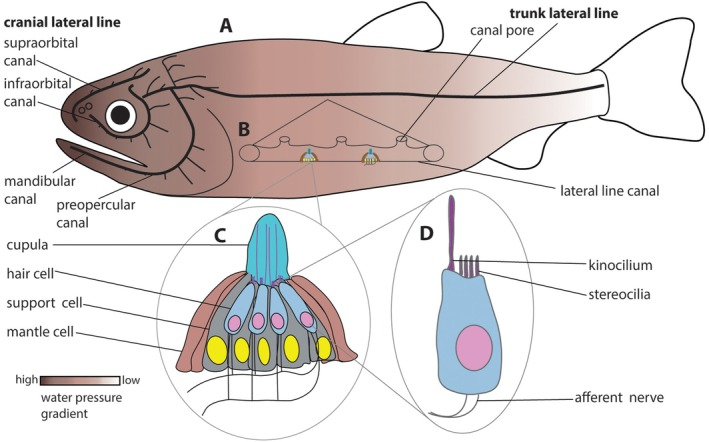
側線器官と内耳には共通する進化的な基盤がある
側線器官と三半規管には、非常によく似た感覚受容の仕組みがあります。
どちらも有毛細胞を利用し、機械的な刺激を神経信号へと変換しています。
側線器官では、水流によって感覚毛が曲げられます。
一方、三半規管では、頭部の回転によって内リンパ液とクプラの間に相対的な動きが生じ、有毛細胞が刺激されます。
つまり、両者は異なる対象を感知していますが、機械的な刺激を有毛細胞で受け取り、神経信号に変換するという基本的な仕組みを共有しています。
もっと言うと、同じく内耳の蝸牛管(かたつむり管・渦巻管)や前庭器官にも同様のものがあります。
| 比較項目 | 側線器官 | 三半規管 |
|---|---|---|
| 主な感知対象 | 周囲の水の動き | 頭部の回転運動 |
| 感覚細胞 | 有毛細胞 | 有毛細胞 |
| 刺激の伝達 | 水流による感覚毛の変位 | 内リンパ液の慣性による感覚毛の変位 |
| 主な役割 | 周囲の環境の把握 | 回転運動の把握 |
では、このような共通性はどのように生まれたのでしょうか?
有毛細胞は内耳が成立するよりも前に進化していた可能性がある
この問題を考えるうえで重要なのが、Fritzsch and Straka(2014)による研究です。
彼らは、脊椎動物の有毛細胞の分子・細胞レベルの進化は、脊椎動物の内耳という複雑な器官が形成されるよりも前に起こったという進化シナリオを提唱しています。
つまり、最初から現在のような内耳が存在していたのではなく、まず機械的な刺激を感知する細胞の仕組みが進化し、その後、それらの細胞が集まって感覚器官を形成するようになったという考え方です。
この考え方をさらに補強するのが、Duncan and Fritzsch(2012)の研究です。
彼らは、機械受容細胞の発生を制御する遺伝子ネットワークが、古い左右相称動物の段階から保存され、進化の過程でさまざまな感覚器官に利用されてきた可能性を論じています。
ショウジョウバエ(昆虫)や線虫(C. elegans)などの無脊椎動物に存在する機械受容細胞の構造遺伝子群が有毛細胞のものと酷似しているという証拠が揃いつつあるのです。
さらには多細胞動物の祖先の襟鞭毛虫に存在する機械受容や細胞極性の形成に関わる基本的な構造遺伝子群(アクチン・チューブリン・ミオシン・カドヘリン・エスピン・β-カテニン・Wnt遺伝子など)とも酷似しています。
これらの研究から考えられるのは、脊椎動物の祖先が、すでに機械的な刺激を感知するための細胞や遺伝子制御の仕組みを持っていたということです。
その後、こうした仕組みが進化の過程で組み合わされ、異なる環境刺激を感知する器官へと特殊化していったと考えられます(Duncan & Fritzsch, 2012; Fritzsch & Straka, 2014)。
ただし、ここで注意したいのは、祖先的な機械受容細胞が現在の側線器官や内耳とまったく同じ器官だったわけではないということです。
現在の側線器官と内耳が、その祖先的な仕組みからどのような順序で分化したのかについては、まだ完全には解明されていません。
発生学から見る側線器官と内耳の関係
脊椎動物の頭部には「プラコード」と呼ばれる特殊な胚組織が存在しています。
プラコードとは、胚の表面に形成される外胚葉の肥厚した領域であり、耳や鼻などの感覚器官、感覚神経節などの形成に関わります。
内耳は「耳プラコード(otic placode)」から形成されます。
一方、側線器官は「側線プラコード(lateral line placodes)」から形成されます。
両者は異なるプラコードから発生しますが、頭部の外胚葉に存在する共通の前駆領域である「前プラコード領域(pre-placodal region)」に由来します。
つまり、発生学的には、側線器官と内耳は共通する発生学的な基盤を持ちながら、異なる器官として形成されるのです(Baker et al., 2008; Schlosser, 2015; Streit, 2001)。
かつては、側線器官が体内に取り込まれることで内耳が形成されたという仮説も提唱されていました。
この仮説では、水流を感知する側線器官が内部に取り込まれ、身体の動きを感知する器官へと変化したと説明されます。
しかし、現在の発生学的な知見を踏まえると、側線器官そのものが内耳へ直接変化したという単純な説明は支持しにくくなっています。
むしろ、機械受容細胞の進化的な基盤や、それらの細胞を形成する遺伝子制御の仕組みが先に成立し、その後、側線器官や内耳のような異なる感覚器官へと特殊化したというシナリオが有力な研究仮説の一つです(Duncan & Fritzsch, 2012; Fritzsch & Straka, 2014)。
側線器官と内耳はどのように役割を分担するようになったのか?
側線器官と内耳の大きな違いは、感知する対象です。
側線器官は、周囲の水の動きを感知します。
一方、内耳は、動物自身の身体の動きや重力に関する情報を感知します。
例えば、魚が水中で泳いでいるとき、側線器官は周囲の水流や近くを通過する物体によって生じる水の動きを感知できます。
それに対して、内耳の前庭器官は魚自身の頭部の回転や重力に対する向きを把握するために働きます。
この2つの感覚情報を組み合わせることで、動物は周囲の環境と自分自身の運動を把握できるようになります。
このように、側線器官と内耳は、共通する機械受容の進化的基盤を持ちながら、それぞれ異なる感覚情報を取得する方向に特殊化してきたと考えられます。
古生物学から見る側線器官の進化:初期脊椎動物の化石に残された証拠
側線器官の進化を考えるうえでは、現生の魚類だけでなく、化石に残された初期脊椎動物の構造も重要です。
側線器官は軟組織から構成されているため、通常の化石では感覚細胞そのものが保存されることはほとんどありません。
しかし、側線器官が存在していた場所には、皮骨などに溝や管状の構造が形成されることがあります。
そのため、化石に残された感覚管の形態を調べることで、古生物の側線器官を推定できます。
古生代の無顎類に見られる感覚管
初期の脊椎動物には、顎を持たない無顎類が多く存在していました。
その中には、甲冑魚類(ostracoderms)と呼ばれる、頭部や体表が硬い骨質の装甲で覆われた動物が含まれています。
これらの動物の化石には、頭部の皮骨に沿って走る溝や管が保存されています。
こうした構造の一部は、側線器官が存在していた場所を示すものと考えられています。
Denison(1966)は、初期脊椎動物の化石に見られる「孔管系(pore-canal system)」に注目しました。
孔管系は、皮骨の内部に広がる細かな管のネットワークと、体表につながる孔から構成されています。
Denisonは、この構造が水の動きを検出する原始的な感覚システムとして機能していた可能性を指摘しました。
特に、甲冑魚類の一群である骨甲類(Osteostraci)では、孔管系と側線管の位置関係を比較できる化石が知られています。
これらの構造を比較すると、側線管が皮骨内部の管状構造と関連して形成されていたことが分かります。
また、Venkataraman et al.(2025)は、初期脊椎動物の化石に残された側線系の形態を再検討し、現生の顎口類の側線系が単純に祖先的な複雑な構造を縮小したものではなく、顎口類の起源に関連して再編成されてきた可能性を論じています。
つまり、側線器官は初期脊椎動物の段階ですでに存在しており、水中の環境を感知する重要な感覚システムだったと考えられます(Denison, 1966; Venkataraman et al., 2025)。
化石から分かること、分からないこと
古生物学的な研究では、化石に保存された構造から、当時の動物がどのような感覚器官を持っていたのかを推定できます。
しかし、化石から直接分かるのは、基本的には器官の形態や位置です。
例えば、皮骨に残された溝から側線管の存在を推定することはできますが、その内部に存在していた有毛細胞がどのような形をしていたのか、どのような遺伝子によって形成されていたのかまでは、通常の化石から直接確認できません。
また、内耳についても、軟骨や膜性迷路そのものが保存されることは限られています。
そのため、化石から得られる形態学的な証拠と、現生動物の発生学的な証拠を組み合わせることが重要になります。
この2つを組み合わせることで、脊椎動物の感覚器官がどのように進化してきたのかを、より詳しく推定できるのです。
三半規管はいつ進化したのか?ヌタウナギとヤツメウナギから考える
三半規管の進化を理解するためには、現生の脊椎動物の中でも古い系統に位置する無顎類に注目する必要があります。
無顎類とは、顎を持たない脊椎動物のグループで、現生の代表例にはヌタウナギとヤツメウナギが含まれます。
これらは脊椎動物亜門に属する円口類というグループを構成しています。
円口類の内耳を調べることは、顎を持つ脊椎動物の内耳がどのように進化したのかを考える重要な手がかりになります。
ヌタウナギとヤツメウナギの内耳
従来の形態学的研究では、ヤツメウナギは2つの半規管を持つ一方、ヌタウナギは1つの半規管を持つとされてきました。
この違いは、脊椎動物の内耳の進化を考えるうえで重要な問題でした。
そこで重要になったのが、成体の内耳の形だけでなく、胚の発生過程を比較する研究です。
Higuchiら(2019)の研究:半規管の進化を発生過程から解明する
この問題に重要な手がかりを与えたのが、Higuchiら(2019)が『Nature』に発表した研究です。
この研究では、ヤツメウナギ(Lethenteron camtschaticum)とヌタウナギ(Eptatretus burgeri)の内耳の発生過程が比較されました。
特に重要なのは、半規管が形成される際に、胚の内耳でどのような形態変化が起こるのかを調べたことです。
研究によって、次のような発生過程が明らかになりました。
ヤツメウナギの場合
発生初期の内耳胞に、2つのくぼみが形成されます。
これらのくぼみは、顎を持つ脊椎動物の内耳に見られる半規管形成の初期過程と類似しています。
しかし、発生が進むと2つのくぼみが融合します。
その結果、1つの半規管に相当する構造が形成されます。
顎を持つ脊椎動物の場合
内耳胞に2つのくぼみが形成されます。
しかし、ヤツメウナギとは異なり、これらのくぼみが完全に分離します。
その結果、前半規管と後半規管が形成されます。
さらに、外側半規管が形成されることで、3つの半規管を持つ内耳が成立します。
この研究で特に重要なのは、ヤツメウナギの発生過程に、顎を持つ脊椎動物と共通する半規管形成の仕組みが見られたことです。
また、ヌタウナギについても発生過程を解析した結果、1つの半規管という構造は祖先的な特徴ではなく、二次的に生じた特徴である可能性が示されました。
つまり、脊椎動物の内耳は、単純に半規管が1つから2つ、さらに3つへと増えていったわけではありません。
むしろ、祖先的な発生プログラムをもとに、半規管の形成過程が変化してきたと考えられます(Higuchi et al., 2019)。
| 動物群 | 半規管の特徴 |
|---|---|
| ヌタウナギ | 1つの半規管 |
| ヤツメウナギ | 2つの半規管とされる |
| 顎を持つ脊椎動物 | 3つの半規管 |
OTX遺伝子から見る半規管の進化
Higuchiら(2019)の研究では、内耳の発生に関わる遺伝子の発現についても調べられています。
特に重要なのが、OTX遺伝子です。
OTX遺伝子は、脊椎動物の頭部や感覚器官の発生に関わる遺伝子群です。
この研究では、ヤツメウナギとヌタウナギの内耳において、OTX遺伝子を含む発生制御遺伝子の発現パターンが調べられました。
その結果、円口類と顎を持つ脊椎動物の間で、内耳の発生に関わる遺伝子制御に共通性があることが示されました。
さらに、顎を持つ脊椎動物に特徴的な外側半規管についても、OTX遺伝子の発現領域が新たに生じたことで単純に形成されたわけではないことが示されています。
むしろ、既存のOTX遺伝子の下流にある発生制御プログラムが進化したことで、外側半規管が形成されるようになったと考えられます。
この結果は、進化が新しい遺伝子の出現だけで起こるのではなく、既存の遺伝子の働き方や発生過程の変化によっても起こることを示しています。
つまり、三半規管の進化は、発生プログラムそのものの進化でもあったのです(Higuchi et al., 2019)。
古生物学的証拠から見る三半規管の進化
現生のヌタウナギやヤツメウナギの発生過程だけでなく、古生代の化石脊椎動物も三半規管の進化を理解する重要な手がかりになります。
特に注目されるのが、甲冑魚類などの絶滅した無顎類です。
甲冑魚類の内耳には2つの半規管が存在していた
古生代の無顎類である甲冑魚類の化石からは、内耳の迷路構造を推定できるものが知られています。
これらの化石では、顎を持つ脊椎動物に見られる3つの半規管ではなく、2つの垂直方向の半規管が確認されています。
この2つの半規管は、現生の顎口類に存在する前半規管と後半規管に相当するものと考えられています。
つまり、少なくとも顎を持つ脊椎動物が登場する以前の段階で、前後方向に対応する2つの半規管が存在していたことになります。
一方、顎を持つ脊椎動物に特徴的な外側半規管は、これらの化石では確認されていません。
このことから、外側半規管は脊椎動物の進化の過程で後から形成された構造であると考えられます(Higuchi et al., 2019; Mackowetzky et al., 2021)。
化石と発生学を組み合わせると何が分かるのか?
ここまでの古生物学的・発生学的な証拠を組み合わせると、半規管の進化について次のように整理できます。
まず、古生代の甲冑魚類などの化石には、2つの垂直方向の半規管が存在していました。
また、現生ヤツメウナギの発生過程では、2つのくぼみが形成された後に融合することが確認されています。
さらに、顎を持つ脊椎動物では、それらのくぼみが分離することで前半規管と後半規管が形成されます。
そして、顎を持つ脊椎動物の系統では、外側半規管が加わることで、現在の顎口類に共通する3つの半規管を持つ内耳が成立しました。
このように、化石は過去の器官の形態を示し、発生学はその器官がどのような過程で形成されるのかを示します。
両者を組み合わせることで、現在の脊椎動物が持つ三半規管の進化の道筋を、より具体的に推定できるのです。
外側半規管はなぜ進化したのか?3つ目の半規管がもたらした利点
三半規管の進化を理解するうえで、特に重要なのが外側半規管の出現です。
前半規管と後半規管を持つ段階から、なぜさらに3つ目の半規管が進化したのでしょうか?
その理由を考えるためには、3つの半規管がそれぞれどのような方向の回転運動を感知しているのかを理解する必要があります。
3つの半規管は異なる方向の回転を感知する
顎を持つ脊椎動物の三半規管は、互いにほぼ直交する3つの平面に配置されています。
それぞれの半規管は、主に次のような回転運動を検出します。
- 前半規管:主に前後方向に頭を傾けるような回転(ピッチ運動)。
- 後半規管:主に左右方向に頭を傾けるような回転(ロール運動)。
- 外側半規管:主に水平面で左右を向くような回転(ヨー運動)。
例えば、人間が首を左右に振って「いいえ」と表現するときの回転は、主にヨー運動です。
一方、うなずくときの回転はピッチ運動に相当します。
また、頭を左右の肩に近づけるように傾ける運動はロール運動に相当します。
このように、3つの半規管が異なる方向に配置されていることで、頭部の回転運動を3次元的に検出できるようになります(Mackowetzky et al., 2021)。
外側半規管は脊椎動物の進化の過程で後から獲得された
Higuchiら(2019)の研究や、Mackowetzkyら(2021)の総説によると、古生代の甲冑魚類などの絶滅した無顎類やヤツメウナギでは、基本的に前半規管と後半規管に相当する2つの半規管が確認されています。
それに対して、顎を持つ脊椎動物では、前半規管と後半規管に加えて外側半規管が存在します。
つまり、外側半規管は脊椎動物の進化の過程で後から獲得された構造だと考えられます。
特にHiguchiら(2019)は、外側半規管の出現が、OTX遺伝子の発現領域が単純に新しく生じたことによるものではなく、OTX遺伝子の下流にある発生制御プログラムの進化によって実現したことを示しました。
これは、すでに存在していた発生の仕組みが変化することで、新しい器官の構造が形成された例といえます。
外側半規管がもたらした利点:水平回転をより精密に検出できる
では、外側半規管が進化したことで、動物にはどのような利点があったのでしょうか?
最も重要なのは、水平面における頭部の回転運動を、より独立した感覚入力として検出できるようになったことです。
魚類や水生動物にとって、水平面での方向転換は日常的に起こる運動です。
例えば、魚が前方を泳いでいるとき、獲物を追いかけるために左右どちらかへ急旋回することがあります。
このとき、頭部は水平面で回転します。
このような回転運動を適切に把握することは、泳ぐ方向を制御したり、視線を安定させたりするうえで重要です。
外側半規管は、この水平面の回転運動を検出するための感覚器官として機能します。
前半規管と後半規管に外側半規管が加わることで、互いに異なる3つの平面の回転運動を、それぞれに対応した感覚器官で検出できるようになりました。
つまり、外側半規管の進化によって、頭部の回転運動をより細かく区別し、運動制御に利用できるようになったと考えられます。
外側半規管がなくても水平運動は感知できる?
ここで重要なのが、ヤツメウナギの研究です。
従来、ヤツメウナギには顎口類のような外側半規管が存在しないと考えられていました。
しかし、ヤツメウナギは水平面で身体を左右にくねらせながら泳ぎます。
この運動を適切に制御するためには、水平面での頭部の回転運動を感知する必要があります。
Makladら(2014)は、ヤツメウナギの内耳を立体的な解剖や電子顕微鏡によって詳しく調べました。
その結果、従来見落とされていた水平半規管に相当する管状構造が、ヤツメウナギの内耳の内側に存在することを報告しました。
これは、顎口類の外側半規管とは異なる位置に存在する構造です。
また、ヤツメウナギの前庭神経は、水平面での回転刺激に対しても応答することが知られています。
つまり、顎口類のような外側半規管がなくても、水平運動を感知する仕組みは成立していたのです。
Makladら(2014)は、ヤツメウナギと顎口類の水平半規管が、それぞれ独立して進化した可能性を提唱しています。
この研究は、外側半規管の進化を理解するうえで重要です。
なぜなら、水平回転を感知する能力そのものが顎口類になって初めて生まれたのではなく、すでに存在していた水平運動の感知機能が、異なる形態によって実現されていた可能性を示しているからです。
したがって、顎口類の外側半規管の進化的な利点は、水平回転を初めて感知できるようになったことではなく、水平回転をより独立した感覚入力として検出し、精密な運動制御に利用できるようになったことだと考えられます(Maklad et al., 2014; Mackowetzky et al., 2021)。
3つの半規管はより複雑な運動制御を可能にした
Fritzsch and Straka(2014)は、半規管の進化を、動物の運動能力や視線の安定化と関連づけて考察しています。
動物が活発に移動するためには、頭部の回転を検出するだけでなく、その情報を眼球や身体の筋肉に伝えて、適切な運動反応を引き起こす必要があります。
例えば、動物が頭部を左右に回転させたとき、眼球は反対方向へ動くことで視線を安定させます。
これは前庭動眼反射と呼ばれる仕組みです。
また、身体の姿勢を維持するためには、前庭神経からの情報を利用して、首や体幹の筋肉の活動を調整する必要があります。
このような仕組みがあることで、動物は移動中も視覚情報を利用しながら、効率的に身体を動かすことができます。
3つの半規管によって、異なる方向の回転運動を検出する能力が高度化したことは、こうした視線の安定化や姿勢制御に有利だったと考えられます。
ただし、3つの半規管がなければ3次元的な回転を一切感知できないというわけではありません。ヤツメウナギの例が示すように、既存の半規管や感覚上皮の形態によって複数方向の運動を感知することも可能です。
外側半規管の進化は、運動を感知するための仕組みをより専門化させ、感覚情報を精密に取得できるようにする進化だったと理解できます。
水中から陸上へ:三半規管の役割はどのように変わったのか?
三半規管の進化を考えるうえで、特に重要なのが脊椎動物の陸上進出です。
脊椎動物の祖先は水中で生活していましたが、進化の過程で一部の系統が陸上へ進出しました。
この環境の変化によって、身体の姿勢や運動を把握するために必要な感覚情報も変化していきました。
水中での三半規管の役割
水中で生活する魚類などの動物にとっても、自分の身体がどの方向に回転しているのかを把握することは重要です。
魚類は泳ぐ際に、上下左右へ身体の向きを変えたり、急激に方向転換したりします。
また、捕食者から逃げたり、獲物を追いかけたりする際にも、身体の回転を適切に制御する必要があります。
三半規管は、このような頭部の回転運動を感知する役割を果たしています。
一方、耳石器官は重力や直線加速度を感知します。
これらの情報を利用することで、魚類は水中を移動する際に自分の身体の向きや運動を把握できるのです。
つまり、三半規管は陸上に進出する以前から、脊椎動物の運動制御に重要な役割を果たしていました。
陸上進出によって身体の姿勢制御が重要になった
水中と陸上では、身体に作用する物理的な力が異なります。
水中では浮力が働き、身体の重さが部分的に支えられます。
一方、陸上では重力によって身体が地面に引き付けられるため、筋肉や骨格を使って身体を支えなければなりません。
そのため、陸上で生活する動物には、身体の傾きや姿勢を適切に把握する能力が重要になります。
例えば、四足歩行する動物では、歩行中に頭部が上下左右に動きます。
二足歩行する人間では、身体の重心を左右の足の上に移動させながら、転倒しないように姿勢を調整する必要があります。
このような運動を制御するためには、身体の回転だけでなく、重力に対する身体の向きや直線的な加速度を把握することも重要です。
耳石器官が重力や直線加速度を感知する
ここで、三半規管と合わせて理解しておきたいのが、耳石器官です。
内耳には、卵形嚢と球形嚢という器官が存在しています。
これらは耳石器官と呼ばれ、重力や直線加速度を感知する役割を持っています。
例えば、エレベーターが上昇するときには、身体に上下方向の加速度が生じます。
また、頭を横に傾けると、重力に対する頭部の向きが変化します。
こうした情報を感知するのが耳石器官です。
重要なのは、耳石器官が陸上進出によって初めて生まれたわけではないということです。
水中生活を送っていた脊椎動物にも、重力や直線加速度を感知する仕組みは存在していました。
つまり、陸上進出に伴って、すでに存在していた前庭感覚の仕組みが、新しい環境での姿勢制御や移動に利用されるようになったのです(Duncan & Fritzsch, 2012; Mackowetzky et al., 2021)。
側線器官は陸上進出によって失われていった
水中から陸上への進出に伴って、もう一つ重要な変化が起こりました。
それは、側線器官の喪失です。
側線器官は、水の動きを感知するための器官です。
そのため、水という媒体が存在しない陸上環境では、魚類と同じような仕組みで周囲の水流を感知する必要がなくなります。
実際に、陸上生活に完全に適応した羊膜類(爬虫類・鳥類・哺乳類を含むグループ)では、側線器官は失われています。
一方、魚類や水中で生活する両生類の幼生では、側線器官が維持されています。
例えば、カエルの幼生であるオタマジャクシは水中で生活しているため、側線器官を利用して周囲の水の動きを感知できます。
しかし、変態して陸上生活を送るようになると、側線器官は失われていきます。
このことからも、側線器官が水中環境への適応と密接に関係していることが分かります(Baker et al., 2008; Venkataraman et al., 2025)。
一方、内耳の前庭器官は陸上進出後も維持されました。
これは、三半規管や耳石器官が感知する身体の運動や重力に関する情報が、陸上でも重要だったためです。
つまり、水中で進化した内耳の感覚システムは、陸上生活にも引き継がれてきたのです。
陸上生活では視覚と前庭感覚の連携が重要になった
陸上で生活する動物にとって、視覚と前庭感覚の連携は非常に重要です。
例えば、人間が歩いているとき、頭部は常にわずかに動いています。
しかし、私たちは頭部の動きによって視界が大きく乱れることなく、前方を見ることができます。
これは、三半規管から得られる回転運動の情報を利用して、眼球の動きを調整しているためです。
この仕組みは「前庭動眼反射」と呼ばれます。
また、視覚から得られる周囲の情報と、内耳から得られる身体の動きに関する情報を組み合わせることで、身体の位置や姿勢を把握できます。
さらに、筋肉や関節に存在する固有感覚受容器からの情報も統合されます。
このように、陸上動物では、前庭感覚・視覚・固有感覚が連携することで、複雑な運動や姿勢制御が可能になっています。
三半規管はなぜ進化したのか?至近因と究極因から考える
ここまでの内容を踏まえて、改めて三半規管がなぜ進化したのかを考えてみましょう。
至近因:機械受容の仕組みと発生プログラムが進化したから
至近因の観点から見ると、三半規管は内リンパ液の慣性と有毛細胞の働きを利用して、頭部の回転運動を感知しています。
その基本となるのは、機械的な刺激を神経信号に変換する有毛細胞です。
Fritzsch and Straka(2014)やDuncan and Fritzsch(2012)が論じているように、機械受容細胞の進化的な基盤は、複雑な内耳が形成されるよりも前に成立していた可能性があります。
その後、耳プラコードやOTX遺伝子などに関係する発生制御機構が進化し、内耳の形態が変化してきました。
Higuchiら(2019)の研究からも分かるように、三半規管の進化は、新しい遺伝子が突然出現した結果ではなく、既存の発生プログラムが変化することで実現したと考えられます。
つまり、三半規管の進化は、機械受容を行う感覚細胞の進化と、内耳の形態形成を制御する発生プログラムの進化が組み合わさった結果だと考えられます。
究極因:移動や姿勢制御を効率よく行うため
一方、究極因の観点から考えると、三半規管が進化した背景には、動物が自分自身の運動を正確に把握する必要性があったと考えられます。
水中で生活する脊椎動物にとっては、泳ぎながら方向転換したり、捕食者から逃げたりするために、身体の回転運動を感知することが重要でした。
さらに、顎を持つ脊椎動物では、外側半規管が加わることで、水平面の回転運動をより独立して検出できるようになりました。
そして、陸上へ進出した動物にとっては、歩行や走行の際に姿勢を維持することが重要になりました。
三半規管が持つ回転運動の感知機能は、こうした陸上生活でも有利に働いたと考えられます。
また、視線を安定させることによって、移動中も周囲の環境を正確に把握できるようになります。
こうした能力は、捕食や逃避だけでなく、日常的な移動や姿勢制御にも役立ったと考えられます。
三半規管の進化は感覚器官の機能分化の歴史でもある
三半規管の進化をさらに広い視点から見ると、これは脊椎動物の感覚器官が機能分化してきた歴史でもあります。
側線器官は周囲の水の動きを感知します。
耳石器官は重力や直線加速度を感知します。
そして三半規管は、頭部の回転運動を感知します。
これらの器官は、機械的な刺激を感知する有毛細胞などの共通した仕組みを持ちながら、それぞれ異なる情報を取得するように特殊化してきました。
さらに、発生過程を制御する遺伝子の働きが変化することで、内耳の形態も変化してきました。
このような機能分化によって、動物は周囲の環境だけでなく、自分自身の身体の状態についても、より詳しい情報を得られるようになったのです。
つまり、三半規管の進化は、単なる器官の形態変化ではなく、動物が環境の中で効率よく移動し、生存するための感覚システムの進化として理解できます。
まとめ:三半規管は水中生活から陸上生活までを支えてきた
三半規管は、脊椎動物の進化の歴史の中で、長い時間をかけて形態や機能を変化させてきた器官です。
その進化を理解するためには、側線器官との関係や、ヌタウナギ・ヤツメウナギなどの無顎類の内耳を調べることが重要になります。
今回紹介した内容を整理すると、次のようになります。
- 側線器官と内耳は、有毛細胞を利用した機械受容の仕組みを共有している。
- 有毛細胞の分子・細胞レベルの進化は、複雑な内耳が形成されるよりも前に起こった可能性がある。
- 側線器官と内耳は異なるプラコードから形成されるが、共通する発生学的な基盤を持っている。
- 初期脊椎動物の化石には、側線器官に関連する感覚管や孔管系が保存されている。
- Higuchiら(2019)の研究では、ヤツメウナギの内耳において2つのくぼみが形成された後に融合する発生過程が明らかになった。
- ヌタウナギの1つの半規管という特徴は、祖先的な状態ではなく、二次的に生じた可能性が示された。
- 顎を持つ脊椎動物では、半規管の発生過程が変化し、3つの半規管が形成されるようになった。
- 外側半規管の進化によって、水平面の回転運動をより独立して検出する感覚システムが発達したと考えられる。
- 水中から陸上への進出に伴い、側線器官は失われていった一方、内耳の前庭器官は維持され、陸上での姿勢制御にも利用されるようになった。
三半規管が進化した理由は、単に身体のバランスを保つためだけではありません。
動物が自分自身の運動を把握し、視覚や筋肉・関節から得られる情報と統合することで、より効率的に移動できるようになることも重要だったと考えられます。
水中で生活していた脊椎動物の祖先が持っていた感覚システムが、長い進化の歴史を経て陸上動物にも受け継がれ、現在の人間の身体にも残っています。
私たちが何気なく歩いたり、走ったり、頭を動かしたりできる背景には、こうした長い進化の歴史が存在しているのです。
引用文献
Baker, C. V. H., O’Neill, P., & McCole, R. B. (2008). Lateral line, otic and epibranchial placodes: Developmental and evolutionary links? Journal of Experimental Zoology Part B: Molecular and Developmental Evolution, 310(4), 370-383. https://doi.org/10.1002/jez.b.21188
Denison, R. H. (1966). The origin of the lateral-line sensory system. American Zoologist, 6(3), 368-370. https://doi.org/10.1093/icb/6.3.368
Duncan, J. S., & Fritzsch, B. (2012). Evolution of sound and balance perception: Innovations that aggregate single hair cells into the ear and transform a gravistatic sensor into the organ of Corti. The Anatomical Record, 295(11), 1760-1774. https://doi.org/10.1002/ar.22573
Fritzsch, B., & Straka, H. (2014). Evolution of vertebrate mechanosensory hair cells and inner ears: Toward identifying stimuli that select mutation driven altered morphologies. Journal of Comparative Physiology A, 200(1), 5-18. https://doi.org/10.1007/s00359-013-0865-z
Higuchi, S., Sugahara, F., Pascual-Anaya, J., Takagi, W., Oisi, Y., & Kuratani, S. (2019). Inner ear development in cyclostomes and evolution of the vertebrate semicircular canals. Nature, 565, 347-350. https://doi.org/10.1038/s41586-018-0782-y
Mackowetzky, K., Yoon, K. H., Mackowetzky, E. J., & Waskiewicz, A. J. (2021). Development and evolution of the vestibular apparatuses of the inner ear. Journal of Anatomy, 239(4), 801-828. https://doi.org/10.1111/joa.13459
Maklad, A., Reed, C., Johnson, N. S., & Fritzsch, B. (2014). Anatomy of the lamprey ear: Morphological evidence for occurrence of horizontal semicircular ducts in the labyrinth of Petromyzon marinus. Journal of Anatomy, 224(4), 432-446. https://doi.org/10.1111/joa.12159
Schlosser, G. (2015). Vertebrate cranial placodes as evolutionary innovations—the ancestor’s tale. Current Topics in Developmental Biology, 111, 235-300. https://doi.org/10.1016/bs.ctdb.2014.11.008
Streit, A. (2001). Origin of the vertebrate inner ear: Evolution and induction of the otic placode. Journal of Anatomy, 199(1-2), 99-103. https://doi.org/10.1046/j.1469-7580.2001.19910099.x
Venkataraman, V., Lopez, M., Prince, V. E., & Coates, M. I. (2025). Re-make, re-model: Evolution and development of vertebrate cranial lateral lines. Biological Reviews, 100(6), 2237-2256. https://doi.org/10.1111/brv.70045